


Shaanxi BLOOM Tech Co., Ltd. jest jednym z najbardziej doświadczonych producentów i dostawców ikatybantu cas 130308-48-4 w Chinach. Zapraszamy do sprzedaży hurtowej wysokiej jakości ikatybantu cas 130308-48-4 na sprzedaż tutaj z naszej fabryki. Dostępna jest dobra obsługa i rozsądna cena.
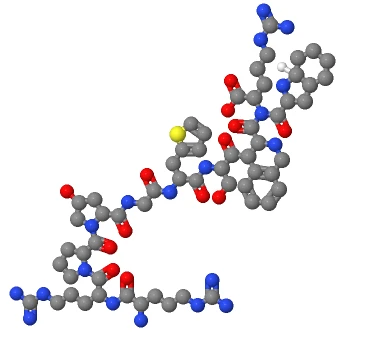
Ikatybant (HOE 140), zwykle biały proszek, wzór cząsteczkowy C59H89N19O13S, CAS 130308-48-4. Firazyr, lek specyficzny dla HAE opracowany przez firmę Shire, został zatwierdzony przez FDA w dniu 25 sierpnia 2011 r. do leczenia ostrych napadów dziedzicznego obrzęku naczynioruchowego u dorosłych w wieku 18 lat i starszych. Jest to także trzeci lek zatwierdzony przez FDA do leczenia napadów HAE. Octan etynibu ma unikalną strukturę podobną do bradykininy, ale zawiera pięć aminokwasów niepochodzących z białek. Jest silnym, selektywnym, konkurencyjnym antagonistą receptorów bradykininy typu 2 (B2), który leczy ostry HAE poprzez hamowanie działania bradykininy związanego z miejscowym obrzękiem, stanem zapalnym i objawami bólowymi w obszarze zatorowym. HAE jest tylko jednym z kilku możliwych wskazań do jego leczenia, podczas gdy inne potencjalne wskazania obejmują astmę, marskość wątroby i inne rodzaje obrzęków naczyniowych. Zatem ten produkt ma wysoką wartość leczniczą i szerokie perspektywy rynkowe.
|
Indywidualne kapsle i korki do butelek:
|
|


|
Wzór chemiczny |
C59H89N19O13S |
|
Dokładna masa |
1304 |
|
Masa cząsteczkowa |
1305 |
|
m/z |
1304 (100.0%), 1305 (63.8%), 1306 (20.0%), 1305 (6.6%), 1306 (4.5%), 1306 (4.5%), 1307 (4.1%), 1307 (2.9%), 1306 (2.7%), 1307 (1.7%), 1307 (1.3%), 1305 (1.0%) |
|
Analiza elementarna |
C, 54.32; H, 6.88; N, 20.40; O, 15.94; S, 2.46 |

Dziedziczny obrzęk naczynioruchowy (HAE) jest rzadką chorobą genetyczną dziedziczoną w sposób autosomalny dominujący, a częstość występowania na świecie wynosi około 1/50 000 do 1/100 000. Podstawowym mechanizmem patologicznym jest niedobór lub nieprawidłowe działanie inhibitora esterazy C1 (C1-INH), co prowadzi do nadmiernej aktywacji układu dopełniacza i układu kontaktowego, powodując w ten sposób nadmierną produkcję bradykininy. Jako silny środek rozszerzający naczynia, bradykinina zwiększa przepuszczalność naczyń i powoduje miejscowy obrzęk tkanek poprzez wiązanie się z receptorami B2 w komórkach śródbłonka. Mechanizm ten staje się bezpośrednią przyczyną ostrych ataków HAE iIkatybantjako selektywny antagonista receptora bradykininy B2, poprzez blokowanie tego szlaku staje się kluczowym lekiem w leczeniu ostrych napadów HAE.
1.1 Wzorce genetyczne i mutacje genowe
HAE dzieli się na typ I i typ II, oba spowodowane mutacjami w genie SERPING1. Pacjenci typu I mają poziom C1-INH poniżej 30% prawidłowego zakresu, podczas gdy pacjenci typu II mają defekty funkcjonalne, ale prawidłowy lub podwyższony poziom C1-INH. Mutacja powoduje, że C1 INH nie jest w stanie skutecznie hamować aktywności czynnika dopełniacza XIIa i kalikreiny, wywołując w ten sposób reakcję kaskadową w układzie kontaktowym.
1.2 Różnorodność fenotypów klinicznych
Objawy kliniczne HAE są bardzo zróżnicowane i typowe objawy obejmują:
Obrzęk skóry: Nieprzygnębiony obrzęk kończyn, twarzy i okolic narządów płciowych, który utrzymuje się przez 2-3 dni i może powodować przebarwienia.
Obrzęk gardła: najbardziej-zagrażający życiu objaw, występujący z częstością około 50%, objawiający się trudnościami w oddychaniu i chrypką.


Nieleczone ryzyko uduszenia może sięgać nawet 30%.
Ból brzucha: spowodowany obrzękiem błony śluzowej jelit, objawiający się ciężką kolką, nudnościami i wymiotami, łatwo błędnie rozpoznawany jako ostry brzuch.
Brak pokrzywki i swędzenia: W przeciwieństwie do obrzęku alergicznego, w przypadku obrzęku HAE nie występuje rumień ani swędzenie skóry, a diagnoza opiera się na badaniach laboratoryjnych.
1.3 Czynniki wyzwalające i wzorce napadów
Ataki HAE są często wywoływane przez łagodny uraz (taki jak zabiegi stomatologiczne), stres emocjonalny, infekcje lub wahania hormonalne (takie jak miesiączki). Częstotliwość napadów jest bardzo zróżnicowana u poszczególnych osób i waha się od kilku razy w roku do kilku razy w tygodniu, co poważnie wpływa na jakość życia pacjentów.
2.1 Molekularne mechanizmy aktywacji układu kontaktowego
C1-INH jest głównym inhibitorem układu kontaktowego, utrzymującym równowagę pomiędzy produkcją i degradacją bradykininy poprzez hamowanie aktywności czynnika XIIa i kininazy. W przypadku niedoboru C1-INH:
Aktywacja czynnika XIIa: Czynnik XII spontanicznie aktywuje się w XIIa na ujemnie naładowanych powierzchniach (takich jak komórki śródbłonka), inicjując endogenny szlak krzepnięcia.
Produkcja kinazy:Ikatybantaktywuje prekalikreinę osocza, która jest kininazą rozszczepiającą kininogen o wysokiej masie cząsteczkowej (HK) w celu wytworzenia bradykininy.
Aktywacja obejścia układu dopełniacza: XIIa jednocześnie aktywuje dopełniacz C1, co prowadzi do powstania konwertaz C3 i C5, dodatkowo uwalniając alergenne toksyny C3a i C5a, zaostrzając odpowiedź zapalną.


2.2 Biologiczne skutki bradykininy i powstawanie obrzęków
Bradykinina pośredniczy poprzez receptory B2 w następujących efektach:
Rozszerzenie naczyń: Aktywacja szlaków śródbłonkowej syntazy tlenku azotu (eNOS) i cyklicznego monofosforanu adenozyny (cAMP) prowadzi do rozluźnienia mięśni gładkich naczyń.
Zwiększona przepuszczalność naczyń: Aktywując syntezę fosfolipazy A2 (PLA2) i prostaglandyn, połączenia komórek śródbłonka zostają przerwane, co prowadzi do wynaczynienia białek osocza.
Przekazywanie sygnału bólowego: Aktywacja kanału kwasu wanilinowego podtypu 1 (TRPV1) receptora przejściowego wywołuje neurogenny stan zapalny i ból.
Doświadczenia na zwierzętach wykazały, że myszy pozbawione receptorów B2 wykazują znaczną redukcję obrzęku po aktywacji układu kontaktowego, co potwierdza, że bradykinina jest głównym mediatorem obrzęku HAE.
2.3 Efekt wzmocnienia reakcji kaskady zapalnej
Bradykinina nie tylko bezpośrednio powoduje wyciek naczyniowy, ale także wzmacnia reakcję zapalną poprzez następujące mechanizmy:
Aktywacja układu dopełniacza: bradykinina indukuje ekspresję w komórkach śródbłonka receptorów C3a i C5a, wzmacniając działanie toksyn alergicznych.
Rekrutacja komórek zapalnych: promowanie nacieku neutrofilów i eozynofili poprzez zwiększenie ekspresji E-selektyny i cząsteczki adhezyjnej komórek naczyniowych-1 (VCAM-1).
Indukowanie uwalniania cytokin: stymulacja komórek śródbłonka do wydzielania interleukiny-6 (IL-6) i czynnika martwicy nowotworu alfa (TNF - ), tworząc pętlę dodatniego sprzężenia zwrotnego.

Mechanizm działania atebanu: precyzyjna blokada sygnalizacji bradykininy

3.1 Struktura chemiczna leku i charakterystyka wiązania z receptorem
Etibante to syntetyczny dekapeptyd zawierający pięć aminokwasów niebiałkowych (D-arginina, D-tyrozyna, hydroksyprolina, tioprolina, D-izoleucyna). Jego struktura jest bardzo podobna do bradykininy, ale jest odporna na degradację przez liazę bradykininy. Badania farmakodynamiczne wykazały, że powinowactwo atebanu do receptorów B2 jest porównywalne z powinowactwem bradykininy, ale szybkość dysocjacji jest wolniejsza, a czas działania wydłuża się 2-3 razy.
3.2 Molekularne podstawy antagonizmu konkurencyjnego
Etibatyd blokuje sygnał bradykininy następującymi metodami:
Konkurencja w wiązaniu receptora: konkuruje z bradykininą o wiązanie się z dodatnim miejscem wiązania receptora B2, zapobiegając indukowanym bradykininą zmianom konformacyjnym w receptorze.
Hamowanie przekazywania sygnału: Blokowanie receptora sprzężonego z białkiem G (GPCR) - za pośrednictwem fosfolipazy C (PLC) i aktywacji cyklazy adenylanowej (AC), hamowanie napływu wapnia i wytwarzania cAMP.
Hamowanie internalizacji: zapobiega internalizacji receptorów B2 po związaniu z bradykininą, utrzymując ekspresję receptorów na powierzchni błony komórkowej.


3.3 Dowody z badań przedklinicznych
Model zwierzęcy: W modelu obrzęku poduszki łapy szczura wywołanego bradykininą, wstępne leczenie atebanem może zmniejszyć objętość obrzęku o 85%, co jest skuteczniejsze niż tradycyjne leki przeciwhistaminowe.
Eksperyment naczyniowy ex vivo: Ekspozycja ludzkich komórek śródbłonka żyły pępowinowej na bradykininę spowodowała całkowite zahamowanie zwiększonej przepuszczalności naczyń i wytwarzania tlenku azotu przez ateban.
Walidacja nokautu genu: myszy z niedoborem receptora B2 nie wykazywały odpowiedzi na bradykininę, co dodatkowo potwierdza specyficzność wobec celu.

Obecnie istnieje wiele opisanych procesów syntezyIkatybant, głównie przy użyciu metody syntezy-na fazie stałej, która polega na stopniowym sprzęganiu aminokwasów.
Metoda syntezy naszego laboratorium zostanie przedstawiona poniżej wyłącznie w celach informacyjnych.
Dodać 11,1 g żywicy z chlorkiem 2-chlorotrimetylu o stopniu podstawienia 0,9 mmol/g do kolumny reakcyjnej w fazie stałej i dodawać pęczniejącą żywicę DMF przez 30 minut. Dodać 3,50 mLDIPEA do 12,98 g Fmoc Arg (Pbf) OH, aktywować przez 5 minut, następnie dodać spęcznioną żywicę DMF dla równowagi reakcji przez 10 minut, następnie dodać 3,50 mLDIPEA, reagować w temperaturze pokojowej przez 45 minut i uszczelnić metanolem przez 20 minut. Po usunięciu roztworu reakcyjnego, DMF przemyto trzykrotnie, następnie trzykrotnie przemyto DCM, a następnie trzykrotnie zastosowano metanol do obkurczania odpowiednio przez 3 minuty, 5 minut i 8 minut, aby otrzymać żywicę Fmoc Arg (Pbf) CTC. Stwierdzono, że stopień podstawienia wynosi 0,5 mmol/g.
Odważ 10 mmol żywicy Fmoc Arg (Pbf) CTC i dodaj ją do reaktora z fazą stałą. Pęcznieć DMF przez 0,5 godziny, następnie dwukrotnie usunąć zabezpieczenie Fmoc 20% DBLK, za każdym razem na odpowiednio 10 minut i 5 minut. Po umyciu podłączyć Fmoc Oic OH. Rozpuścić 11,73 g Fmoc Oic OH, 4,9 g HOBt i 6,1 ml DIC w DCM (w celu rozpuszczenia można dodać niewielką ilość DMF), aktywować w łaźni lodowo-wodnej przez 7 minut, dodać do reaktora z fazą stałą- i reagować w temperaturze pokojowej przez 1-2 godziny. Punkt końcowy reakcji określa się metodą ninhydrynową. Po zakończeniu reakcji usunąć roztwór reakcyjny, przemyć DMF, a następnie dwukrotnie usunąć zabezpieczenie Fmoc 20% DBLK, za każdym razem odpowiednio na 10 minut i 5 minut. Po przemyciu przygotuj się do sprzęgania kolejnego aminokwasu.
Rozpuścić 11,91 g Fmoc D Cit OH, 5,00 g HOAt i 11,4 g HATU w DCM (można dodać niewielką ilość DMF w celu rozpuszczenia), dodać 3,87 g DIPEA w łaźni lodowo-wodnej w celu aktywacji przez 7 minut, następnie dodać do reaktora z fazą stałą- i reagować w temperaturze pokojowej przez 1-2 godziny. Punkt końcowy reakcji określa się metodą ninhydrynową. Po zakończeniu reakcji usunąć roztwór reakcyjny, przemyć DMF, a następnie usunąć zabezpieczenie Fmoc za pomocą 20% DBLK. Po przemyciu przygotuj się do sprzęgania kolejnego aminokwasu.
Rozpuścić 11,49 g Fmoc Ser (tBu) OH, 5,00 g HOAt i 6,1 ml DIC w DCM (można dodać niewielką ilość DMF jako środek solubilizujący), aktywować w łaźni lodowo-wodnej przez 7 minut, następnie dodać do reaktora z fazą stałą- i reagować w temperaturze pokojowej przez 1-2 godziny. Punkt końcowy reakcji określa się metodą ninhydrynową. Po zakończeniu reakcji usunąć roztwór reakcyjny, przemyć DMF, a następnie usunąć zabezpieczenie Fmoc za pomocą 20% DBLK. Po przemyciu przygotuj się do sprzęgania kolejnego aminokwasu.
Rozpuścić 11,79 g Fmoc Thi OH, 5,00 g HOBt i 11,37 g HBTU w DCM (w celu rozpuszczenia można dodać niewielką ilość DMF), aktywować 3,87 g DIPEA w łaźni lodowo-wodnej przez 7 minut, następnie dodać do reaktora z fazą stałą- i reagować w temperaturze pokojowej przez 1-2 godziny. Punkt końcowy reakcji określa się metodą ninhydrynową. Po zakończeniu reakcji usunąć roztwór reakcyjny, przemyć DMF, a następnie usunąć zabezpieczenie Fmoc za pomocą 20% DBLK. Po przemyciu przygotuj się do sprzęgania kolejnego aminokwasu.
Rozpuścić 8,91 g Fmoc Gly OH, 5,00 g HOBt i 9,63 g TBTU w DCM (w celu rozpuszczenia można dodać niewielką ilość DMF), aktywować 3,63 g TMP w łaźni lodowo-wodnej przez 7 minut, następnie dodać do reaktora z-fazą stałą i reagować w temperaturze pokojowej przez 1-2 godziny. Punkt końcowy reakcji określa się metodą ninhydrynową. Po zakończeniu reakcji usunąć roztwór reakcyjny, przemyć DMF, a następnie usunąć zabezpieczenie Fmoc za pomocą 20% DBLK. Po przemyciu przygotuj się do sprzęgania kolejnego aminokwasu.
Rozpuścić 12,27 g Fmoc Hyp (tBu) OH, 5,00 g HOAt i 9,66 g TATU w DCM (z dodatkiem małej ilości DMF jako środka solubilizującego), dodać 3,63 g TMP do łaźni lodowo-wodnej w celu aktywacji przez 7 minut, następnie dodać do reaktora z-fazą stałą i reagować w temperaturze pokojowej przez 1-2 godziny. Punkt końcowy reakcji określa się metodą ninhydrynową. Po zakończeniu reakcji usunąć roztwór reakcyjny, przemyć DMF, a następnie usunąć zabezpieczenie Fmoc za pomocą 20% DBLK. Po przemyciu przygotuj się do sprzęgania kolejnego aminokwasu.
Rozpuścić 10,11 g Fmoc Pro OH, 5,00 g HOAt i 11,4 g HATU w DCM (w celu rozpuszczenia można dodać niewielką ilość DMF), aktywować 3,87 g DIPEA w łaźni lodowo-wodnej przez 7 minut, następnie dodać do reaktora z fazą stałą- i reagować w temperaturze pokojowej przez 1-2 godziny. Punkt końcowy reakcji określa się metodą ninhydrynową. Po zakończeniu reakcji usunąć roztwór reakcyjny, przemyć DMF, a następnie usunąć zabezpieczenie Fmoc za pomocą 20% DBLK. Po przemyciu przygotuj się do sprzęgania kolejnego aminokwasu.
Rozpuścić 19,44 g Fmoc Arg (Pbf) OH, 5,00 g HOAt i 11,4 g HATU w DCM (można dodać niewielką ilość DMF w celu rozpuszczenia), aktywować 3,87 g DIPEA w łaźni lodowo-wodnej przez 7 minut, następnie dodać do reaktora z fazą stałą- i reagować w temperaturze pokojowej przez 1-2 godziny. Punkt końcowy reakcji określa się metodą ninhydrynową. Po zakończeniu reakcji usunąć roztwór reakcyjny, przemyć DMF, a następnie usunąć zabezpieczenie Fmoc za pomocą 20% DBLK. Po przemyciu przygotuj się do sprzęgania kolejnego aminokwasu.
Rozpuścić 19,44 g Fmoc D Arg (Pbf) OH, 5,00 g HOAt i 11,4 g HATU w DCM (można dodać niewielką ilość DMF w celu rozpuszczenia), dodać 3,87 g DIPEA w celu aktywacji w łaźni lodowo-wodnej przez 7 minut, następnie dodać do reaktora z fazą stałą- i reagować w temperaturze pokojowej przez 1-2 godziny. Punkt końcowy reakcji określa się metodą ninhydrynową. Po zakończeniu reakcji usunąć roztwór reakcyjny, przemyć DMF, a następnie usunąć zabezpieczenie Fmoc za pomocą 20% DBLK. Przemyć trzykrotnie DMF, trzykrotnie DCM, obkurczać trzykrotnie metanolem, odpowiednio przez 3 minuty, 5 minut i 8 minut. Wysuszyć próżniowo, aby otrzymać żywicę peptydową z octanu Etibante.
Przygotuj 200 ml odczynnika krakującego, w tym 190 ml kwasu trifluorooctowego, 6 ml triizopropylosilanu i 4 ml wody i wstępnie schładzaj przez 30 minut w lodówce. Dodać 20,0 g żywicy peptydowej z octanu Etibante do okrągłodennej kolby o pojemności 500 ml, następnie wlać 200 ml przygotowanego odczynnika do lizy do żywicy, mieszać w łaźni lodowej, wprowadzić gazowy azot i reagować przez 30 minut. Usunąć łaźnię lodową i kontynuować reakcję w temperaturze pokojowej przez 2 godziny. Przesączyć żywicę i zebrać przesącz. Żywicę przemyć niewielką ilością kwasu trifluorooctowego, przesączyć, a przesącz połączyć. Powoli dodać przesącz do 20 l eteru lodowego, aby utworzyć biały osad. Wirować przy 3000 obr./min. w celu zebrania osadu. Przemyć osad 5 razy eterem lodowym i wysuszyć pod zmniejszonym ciśnieniem, otrzymując 10,3 g surowego peptydu. CzystośćIkatybantwas detected to be>90% metodą HPLC.
Popularne Tagi: ikatybant cas 130308-48-4, dostawcy, producenci, fabryki, hurtownia, zakup, cena, luzem, na sprzedaż